Симбиогенез — ранние теории
В 1867 году в Петербурге на немецком языке был опубликован труд 32-летнего ботаника А. С. Фаминцына (1835—1918) и его ученика О. В. Баранецкого о строении и природе зеленых клеток — гонидий у лишайников[516]. Они показали, что зеленые клетки лишайников могут быть выделены из них, что гонидии способны к самостоятельному размножению зооспорами и делением клеток и что эти клетки похожи на свободноживущие водоросли одного из родов. Правда, молодые авторы не высказали предположения о том, что лишайники содержат в своем геле клетки водорослей и грибов, но такой вывод напрашивался сам[517]. Всего лишь через два года этот вывод был сделан уже другим автором, но доказательства были найдены лишь через 11 лет[518].
В 1880—1885 гг. было подтверждено открытие швейцарско-немецкого ботаника Симона Швенденера (1829—1919), сделанное им в 1869 г., что лишайники, считавшиеся одним из типов царства растений, представляют собой не самостоятельные организмы, а продукты симбиоза грибов и водорослей. Каждый конкретный вид лишайников (а каждый систематик этой группы понимает, что такое вид у лишайников) состоит из специфического вида грибов и специфического для данного гриба симбиотического вида водорослей (впрочем, одни и те же виды водорослей могут встречаться у разных видов лишайников).
Таким образом, было показано, что целый тип растений (у ботаников принято говорить вместо типа об отделе, но это не меняет сути) возник не на основе дивергенции, а в результате симбиоза: не из одного, а из двух филумов, т. е. лишайники имеют симбиогенетическое происхождение с последующей дивергенцией симбиогенетических форм[519].
Это открытие потрясло умы естествоиспытателей. Оно настолько не укладывалось в стиль мышления эпохи классического дарвинизма с ее страстью к рисованию дивергентных родословных древ, что большинство ботаников просто-напросто исключило лишайники из филогенетической системы растений. Лишайники стали рассматривать как «дополнение» к низшим растениям. В их составе выделяли классы, семейства, но их не называли отделом. Подобное страусиное решение могло вполне удовлетворить преподавателей университетов, но не должно было снять с повестки дня вопрос о том, какова же роль симбиогенеза, т. е. формообразования на основе симбиоза, в эволюции.
Этот вопрос поставили в начале XX в. русские ботаники — уже упоминавшийся нами автор статьи 1867 года, ставший почтенным академиком А. С. Фаминцын[520] и К. С. Мережковский[521] (брат известного поэта Д. С. Meрежковского) — оригинальнейший и, к сожалению, полузабытый теоретик эволюционизма (рис. 244)[522]. Они выдвинули гипотезу симбиогенетического происхождения клеток зеленых растений. А. С. Фаминцын в 1907 и 1912 годах опубликовал две части своего труда «О роли симбиогенеза в эволюции организмов».
Рис. 244. Константин Сергеевич Мережковский.
Из А. П. Богданова (1889) .
К. С. Мережковский еще в 1905 г. подверг критике представление о том, что хлоропласта происходят в результате дифференциации цитоплазмы, он подчеркивал непрерывность пластид в чреде поколений. Мережковский предположил, что клетки сине-зеленых могли быть вероятными предшественниками хлоропластов и, таким образом, фотосинтезирующая клетка зеленых растений имеет симбиогенетическое происхождение. В 1909 г. Мережковский предложил широко используемый ныне термин «симбиогенез». «Прямым следствием этой концепции, как указывает и сам Мережковский, является признание полифилии органического мира в противоположность монофилии Геккеля и других эволюционистов конца XIX — начала XX в.», — справедливо пишут современные исследователи этой проблемы О. Г. Кусакин и A. Л. Дроздов[523]. Представление о взглядах Мережковского на симбиогенетическое происхождение высших таксонов можно получить из рис. 245.
Концепция А. С. Фаминцына[524] и К. С. Мережковского (1855—1921) была затем развита нашим видным ботаником Б. М. Козо-Полянским (1890—1957), который дал вполне дарвиновское объяснение этому явлению[525]. Интересно, что все три отечественных автора, активно выступавших в начале нашего века в пользу симбиогенетической теории происхождения эукариотической клетки, были ботаниками. Ботаниками были и критики этой теории, в их число входил известный специалист по лишайникам А. А. Еленкин (1875—1942).
Проблема симбиогенеза в первой половине нашего века мало волновала цитологов, зоологов, микробиологов. К концу 30-х гг. все аргументы в спорах сторон были исчерпаны, и гипотеза Фаминцына — Мережковского вскоре была забыта[526].
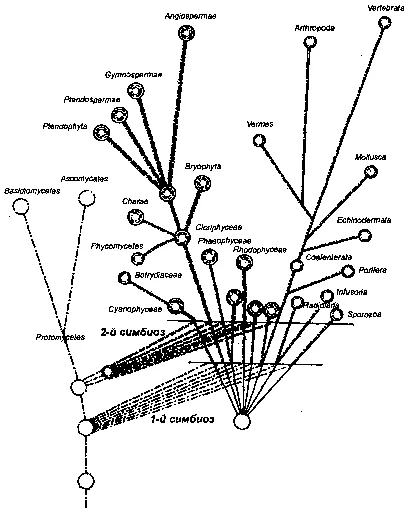
Рис. 245. Представления К. С. Мережковского о происхождении высншх таксонов путем двукратного симбиогенеза.
Из: О. Г. Кусакин, A. Л. Дроздов (1994).
Забвение гипотезы симбиогенеза в 30—40-х гг. XX в. не удивительно. По сути дела, все возможности световой микроскопии для позитивного или негативного решения этого вопроса были исчерпаны. Споры могли вестись в основном на основе истолкования или перетолкования давно известных фактов.
Симбиогенез — новейшие теории
Электронно-микроскопические исследования 50—60-х гг. XX в.[527] выявили поразительное сходство в ультраструктурах таких органелл клетки, как центриоли, входящие в состав митотического аппарата, и базальные тельца жгутиков (кинетосомы). Возникла мысль об общности происхождения этих органелл от какой либо общей исходной органеллы.
Давно обсуждавшаяся в литературе мысль о сходстве строения энергетических органелл клетки — митохондрий и пластид друг с другом также получила в те годы электронно-микроскопическое подтверждение. В первой половине 60-х гг. XX века было обнаружено, что эти группы цитоплазматических органелл не только способны к саморазмножению (авторепродукции), но и содержат внеядерную ДНК[528]. На долю внеядерной ДНК авторепродуцирующихся органелл приходится от 5% (у большинства эукариот) до 40% (у трипаносом, имеющих сложную органеллу движения — блефаропласт, или кинетопласт) всей ДНК клетки.
В 1960-х годах было обнаружено принципиальное различие в строении ДНК у прокариот — клеточных организмов с недифференцированным ядром (бактерии, синезеленые) — и ящерной ДНК эукариот — клеточных организмов, у которых клетка подразделена на ядро и цитоплазму. Оказалось, что если ДНК ядра эукариот уложена в линейно упорядоченные структуры — хромосомы, то ДНК прокариот имеет кольцевидную упаковку, где двойная спираль ДНК замкнута в кольцо[529]. Вскоре было доказано, что цитоплазматическая ДНК всех изученных до сих пор клеточных органелл эукариот имеет кольцевое строение, сходное с кольцевым строением ДНК бактерий и сине-зеленых.
Комплекс данных по ультраструктуре клеточных органелл и по анализу ДНК[530] дал новый фактический материал для возрождения старой концепции симбиогенетического происхождения клетки эукариот. В наиболее энергичной форме эта концепция развивается американской исследовательницей Линн Саган-Маргулис[531]. Эта гипотеза была поддержана многими специалистами[532].
Суть современной концепции симбиогенеза[533] заключается в том, что клетка эукариот сформировалась в результате нескольких последовательных актов симбиогенеза: 1) симбиоз крупной анаэробной амебоидной прокариотической клетки с мелкими аэробными бактериями привел к трансформации клеток последних в митохондрии; 2) симбиоз этой прокариотической клетки со спирохетоподобными бактериями привел к появлению жгутикового аппарата, кинетосом и центросом. Клетка с этим набором органелл после дифференциации ядра от цитоплазмы дала начало линии, ведущей к царствам животных и Грибов. Еще один акт симбиогенеза (3), произошедший в результате симбиоза с прокариотическими клетками сине-зеленых, привел к возникновению пластид — отсюда идет ствол царства растений (рис. 246).
В 1970-е годы были выдвинуты и несимбиогенетические теории происхождения митохондрий и некоторых других органелл, основанные на допущении возможности самостоятельной эволюции внутриклеточных органелл. Эти гипотезы иногда, в противовес симбиогенетическим, называют автогенетическими[534], что нельзя считать удачным. (Под автогенезом в эволюционной биологии понимается развитие структур независимо от воздействия среды, в том числе и от действия отбора. Однако сторонники «автогенетического» происхождения митохондрии и других органелл не пытаются отрицать влияния отбора на их возникновение.)
Согласно одной из этих теорий, митохондрии могли возникнуть путем впячивания (инвагинационно) за счет обособления пристенных мембран и локализации в митохондриях ферментов гликолиза и дыхания[535]. Однако инвагинационная гипотеза не объясняет путей возникновения митохондриальной ДНК и ее сходства с ДНК прокариот[536].
Несколько более вероятной представляется клональная гипотеза происхождения ДНК-содержащих органелл цитоплазмы[537]. Согласно концепции Богорада, можно предположить, что единый геном исходной прокариотической клетки мог претерпеть дупликацию (удвоение), затем дуплицированные участки сегрегировались и клонально редуплицировались из поколения в поколение, часть участков исходного генома обособилась затем в ядре (ядерная ДНК), другие дали авторедуплицирующуюся основу вне-ядерных органелл с их цитоплазматической ДНК.
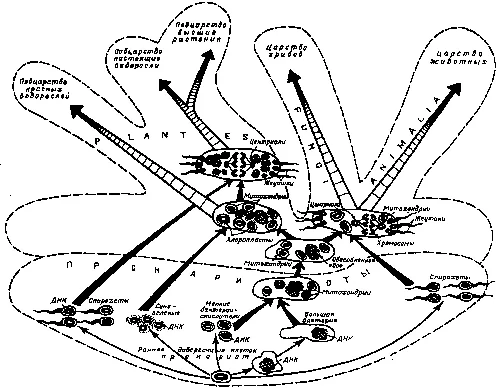
Рис. 246. Схема возможной последовательности этапов симбиогенетического происхождения клеток эукариот, наложенная на возможное родословное древо клеточных (Caryota). Показана неоднократность этапов симбиогенеза клетки эукариот.
Из: Н. Н. Воронцов (1980).
Тем не менее, несмотря на наличие уязвимых для критики мест (главное из них — проблема возникновения эукариотического ядра), симбиогенетическая теория возникновения клетки эукариот приобретает все большее распространение[538]. Как справедливо отмечается в обзоре проблемы[539], «только гипотеза симбиогенеза способна дать объяснение многочисленным корреляциям между морфологическими и биохимическими признаками энергодающих органелл и свободноживущих прокариот».
Принимая здесь гипотезу симбиогенеза как наиболее вероятную, обратим внимание, что ее анализ с неизбежностью приводит к выводу не только о недивергентном происхождении ранних эукариот, но и о многократности этапов симбиогенеза[540].
Нам приходится признать, что фотосинтезирующие растения возникли в результате по крайней мере двух независимых актов симбиогенеза. Дело в том, что представители типа красных водорослей (Rhodophycea) отличаются от всех других типов эукариот отсутствием подвижности не только женской, но и мужской гамет, лишены жгутиковых стадий в развитии и вообще жгутиковых клеток, равным образом у них нет клеточного центра, в основе которого также лежит цитоплазматическая ДНК и те же структуры, что и в основе строения жгутиков. Возникновение митотического аппарата происходило независимо по крайней мере дважды: у предков царств грибов и животных, с одной стороны, и в подцарствах настоящих водорослей (кроме Rhodophycea) и высших растений — с другой. Можно построить и иную последовательность этапов симбиогенеза, но ни одна другая схема, как и предложенная, не может оказаться монофилетической.
Если в случае гибридогенеза и полиплоидных комплексов мы убедились, что макроэволюция на уровне возникновения новых родов и видов может иметь недивергентный, ретикулярный характер, то анализ данных по симбиогенетическому происхождению цитоплазматических органелл и внеядерной ДНК говорит нам о том, что мегаэволюция также может носить недивергентный характер, идти путем синтезогенеза.