Экспериментальный синтез видов
Возможность гибридогенного происхождения отдельных видов допускалась еще Линнеем и другими ботаниками того времени. Однако экспериментальные доказательства такой возможности и пути преодоления стерильности межвидовых гибридов были открыты лишь в 20—30-х гг. XX века.
Общеизвестны классические опыты Георгия Дмитриевича Карпеченко (1899—1942) по синтезу межродового гибрида между редькой (Raphanus sativus) и капустой (Brassica oleracea). При гибридизации (рис. 239) геномы редьки RR и капусты ВВ, имеющие сходное число хромосом (2n=18), дают гаплоидные гаметы с 9 хромосомами типа Л и В; их слияние дает стерильный гибрид с геномом RB. Стерильность вызвана нарушением конъюгации хромосом в мейозе, поскольку хромосомы группы R не имеют гомологов в группе В. В результате нарушений мейоза образовывались единичные гаметы с нередуцированным числом хромосом с геномом RB. Слияние двух таких гамет ведет к возникновению аллополиплоида с геномом RRBB.
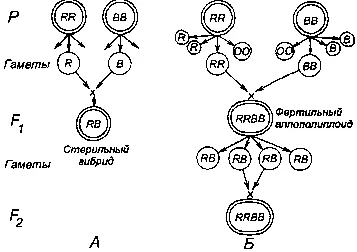
Рис. 239. Схема экспериментов Г. Д. Карпеченко по синтезу рафанобрассики — межродового гибрида с неограниченной плодовитостью, репродуктивно изолированного от предковых родов — редьки (Raphanus) и капусты (Brassica).
Из: Н. Н. Воронцов (1980).
У полученного аллополиплоида в мейозе хромосомы R конъюгировали с if, а В с В. Таким образом, была впервые в мире преодолена гибридная стерильность. Эта работа Г. Д. Карпеченко, результаты которой были опубликованы в 1924—1927 гг., не только показала способ получения плодовитых гибридов при отдаленной гибридизации, что затем стало широко использоваться в селекционной практике всего мира, но и продемонстрировала пути видообразования за счет аллополиплоидии в мире растений. Не случайно итоговая работа 1927 г. имела подзаголовок «К проблеме экспериментального видообразования»[500]. По сути дела, синтез рафанобрассики был первым случаем конструирования нового генома, т. е. того, что в конце 70-х гг. нашего века стало называться генетической инженерией.
Практическое значение самой рафанобрассики было равно нулю. Она, как говорили недруги генетики из окружения Т. Д. Лысенко, унаследовала «от редьки вершки, от капусты корешки». Н. И. Вавилов прекрасно понимал принципиальное значение опытов Г. Д. Карпеченко и те огромные перспективы, которые открывает этот путь как в экспериментальном решении проблем видообразования, так и в практике селекции. В 1935 г. Карпеченко опубликовал краткую, но чрезвычайно емкую книжку «Теория отдаленной гибридизации». Ближайший сотрудник Н. И. Вавилова, разделивший трагическую судьбу своего учителя, Г. Д. Карпеченко своими экспериментами заложил основы экспериментального изучения роли полиплоидии и гибридогенеза в видообразовании.
Если Г. Д. Карпеченко первым синтезировал новый, репродуктивно изолированный от родительских вид растений, то шведский генетик А. Мюнтцинг[501] в 1931 г. впервые осуществил ресинтез дикорастущего вида пикульника Galeopsis tetrahit путем аллополиплоидии из двух диплоидных видов G. specioso и G. pubescens (рис. 240). Сотрудник Н. И. Вавилова Владимир Алексеевич Рыбин[502] (1893—1979) ресинтезировал культурную сливу (Prunus domestica), создав копию ее генома (рис. 240) путем аллополиплоидной гибридизации терна (P. spinosa) и алычи (Р. divaricata). Дончо Костов[503] ресинтезировал аллотетраплоидный культурный табак (Nicotiana tabacum) путем скрещивания двух диплоидных исходных видов (рис. 240). Путем ресинтеза было доказано аллополиплоидное гибридогенное происхождение ряда видов дикорастущих и культурных растений. Ботаники считают гибридизацию одним Из важнейших путей эволюции растений. Видообразование путем гибридизации разных видов, создание нового генома на основе объединения двух ранее обособленных генофондов — один из простейших примеров синтезогенеза.
Рис. 238. Дмитрий Константинович Беляев.
Фото из архива автора.
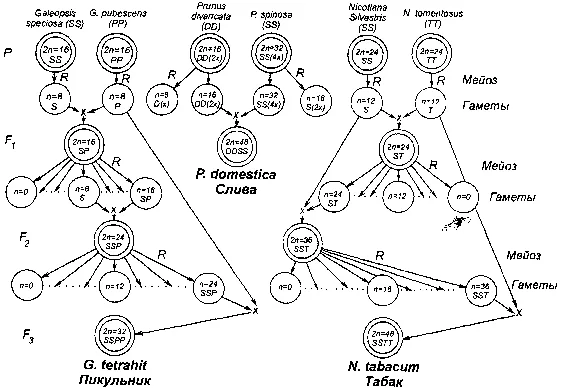
Рис. 240. Схема ресинтеза пикульника, табака и сливы.
Из: Воронцов Н. Н. (1980).
Американский ботаник Э. Андерсон[504] и Г. А. Левитский[505] были, по-видимому, первыми, кто графически представил принципиальные различия между дивергенцией видов путем кладогенеза и синтезогенезом (не используя этих терминов) при аллополиплоидии (рис. 241).
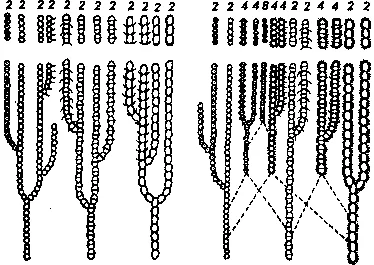
Рис. 241. Схема Андерсона-Левитского, демонстрирующая различия в филогенезе без аллополиплоидии (слева) и при аллополиплоидии (справа). 2, 4, 8 — основные наборы хромосом.
По Е. Anderson (1937) из Г. А. Левитского (1939).
До недавнего времени считалось, что гибридогенез и аллополиплоидия свойственны исключительно или преимущественно эволюции растений. В настоящее время накапливается все больше данных, говорящих о роли этого пути видообразования у животных, в том числе и у позвоночных. Обзор многочисленных уже данных о гибридогенном видообразовании у рыб можно найти в монографии В. П. Васильева[506]. У рыбок щиповок (Cobitis) в Японии и в Подмосковье были обнаружены аллополиплоидные формы. О возможности полиплоидного происхождения лососевых писал в 1944 г. шведский исследователь Г. Свердсон[507], но его данным не придавали значения, его гипотезу рассматривали как экстравагантную. Считалось, что полиплоидия у бисексуальных животных невозможна. Однако кариологические исследования и данные электрофореза, полученные в 70-е гг., показали, что полиплоидия и гибридогенез играли важную роль в видообразовании многих групп рыб, в том числе и лососевых[508].
Исследования нашей лаборатории показали, что во многих случаях изоляционные барьеры между видами млекопитающих не абсолютны и поток генов может идти через видовые барьеры путем гибридизации. Отмечены в природе плодовитые гибриды между малым (Spermophilus pygmaeus) и крапчатым (Sp. suslicus), между большим (Sp. major) и краснощеким (Sp. erythrogenys) сусликами. Несмотря на частичное снижение плодовитости, между разнохромосомными формами слепушонок получены в эксперименте гибриды с 2n=44 при скрещивании форм с 2и—54 и 2n=34! Вероятно, некоторые из новых хромосомных форм, по кариологии достигающие видового ранга, возникли в результате природной гибридизации разных кариоморф.
Е. А. Ляпунова обратила внимание на то, что «гибридизация разнохромосомных форм в природе играет двоякую роль: с одной стороны, она может вести к возникновению новых хромосомных вариантов, а с другой стороны, пониженная плодовитость гибридов ведет к становлению изоляционных барьеров»[509].
Полиплоидные комплексы
Наиболее парадоксальные случаи видообразования путем гибридизации — так называемые полиплоидные комплексы, открытые и подробно изученные американским ботаником-эволюционистом Г. Ледьярдом Стеббинсом (род. 1906)[510]. Представим себе четыре вида А, В, С и D, каждый из которых имеет только ему свойственный хромосомный набор с соответствующими диплоидными числами, равными 2n(АА)=18, 2n(ВВ)=22, 2n(CС)=16, 2n(DD)=24. Каждый из этих видов репродуктивно изолирован! ото всех остальных, занимает свою экологическую нишу. Эти виды могут дать шесть аллотетраплоидных вариантов: Е (2n=40, геном ААВВ), F (2n=34, ААСС), G (2n=42, AADD), Н (2n=38, BBCC), I (2n=46, BBDD), J (2n=40, CCDD). Каждый из возникших аллотетраплоидов оказывается репродуктивно изолированным как от другого аллотетраплоида, так и от предковых видов A—D, т. е. генетически все они настоящие виды, а обладая различными генотипами и, соответственно, различными фенотипами, они смогут бороться за завоевание разных экологических ниш.
Если вновь, уже на уровне аллотетраплоидов произойдет нарушение процесса редукции числа хромосом в мейозе, то слияние тетраплоидных гамет может дать серию вариантов аллоокгоплоидов, например, AABBCCDD с 2n=80, т. е. форму, предками которой будут четыре диплоидных и два аллотетраплоидных вида. Такие формы, называемые полиплоидными комплексами, или компилоспециес (рис. 242), были получены в эксперименте и обнаружены в природе[511] у некоторых родов цветковых растений (ежи — Dactylus[512], хлопчатника — Gossypium, кларкии — Clarkia). Таким образом, предком одного вида, по крайней мере аллополиплоидного, может быть не один, а несколько видов.
То обстоятельство, что в ходе видообразования может происходить чередование дивергенции (кладогенеза) и процесса слияния разных ветвей одного ствола, было известно и равнее. Так, уже Ф. Г. Добржанский (1937)[513] отчетливо представлял, что далеко не всегда новый вид образуется из одной популяции. Такую эволюцию Добржанский назвал ретикулярной, или сетчатой эволюцией (рис. 243). Однако когда говорят о ретикулярной эволюции, то обычно имеют в виду слияние генофондов нескольких популяций одного вида или же подвидов внутри вида, а начиная с видового уровня, когда возникает репродуктивная изоляция, говорят лишь о дивергентной эволюции. Истинная картина, наблюдающаяся в природе, как мы видели, может быть гораздо более сложной. Слияние генофондов разных видов в случае растений и животных с наружным оплодотворением может идти лишь за счет нарушений мейоза без разрушения иных эволюционных барьеров.
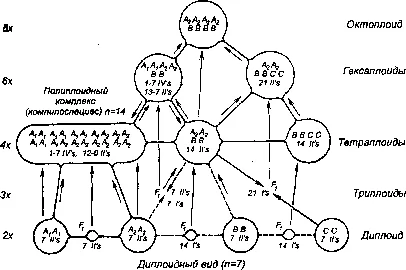
Рис. 242. Схема происхождения компилоспециеса (полиплоидного комплекса), родоначальниками которого являются несколько «старых» видов.
По Л. Стеббинсу (1977) из Н. Н. Воронцова (1980).
Аллополиплоидия[514], возникновение полиплоидных комплексов[515] — все это примеры макроэволюции, идущей своеобразным путем. Здесь неуместно говорить о том, что микроэволюционные процессы предшествовали видообразованию (хотя не подлежит сомнению, что микроэволюционные процессы изменяли генотипические составы популяций каждого из предковых видов, что выживание возникших аллополиплоидов во многих случаях будет зависеть от таких микроэволюционных событий, как возникновение точковых мутаций отдельных генов, увеличение частот аллелей, повышающих приспособленность полиплоидов к каким-то конкретным условиям среды, и т. п.).
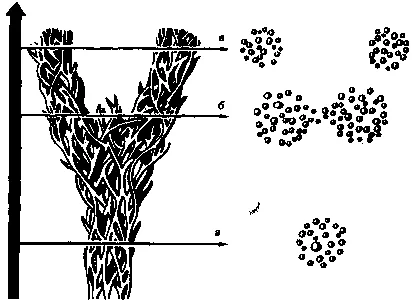
Рис. 243. Ретикулярная эволюция.
Из: Th. Dobzhansky (1951).