Частота встречаемости хромосомных мутаций
Еще совсем недавно господствовало представление об относительной редкости хромосомных мутаций. Обзор данных по кариологии 2000 видов млекопитающих говорит о том, что около 4—5% видов характеризуются истинным внутрипопуляционным хромосомным полиморфизмом[677]. Среди роющих млекопитающих (слепушонки, слепыши, цокоры, гоферы, туко-туко и др.) частота внутрипопуляционного хромосомного полиморфизма достигает 40—50%[678]. Создается впечатление, что частота возникновения оптически обнаруживаемых крупных хромосомных мутаций у млекопитающих (она, бесспорно, варьирует от группы к группе) может быть величиной порядка от 1×10⁻² до 1×10⁻³, т. е. достаточно высокой.
Следующий вопрос, который возникает при этом: равновероятно ли образование разрывов по длине хромосом? Если шансы на разрыв хромосомы в любой точке равны, то вероятность встреч в зиготе двух одинаковых хромосомных мутаций крайне низка. В исследованиях по хромосомному полиморфизму у цокоров Myospalax туоspalax [679], по полиморфизму 7-хромосомы у арктического суслика Citellus parryi [680] было показано, что разрывы и слияния хромосом идут на границах гетерохроматиновых блоков, заполненных генетически инертным материалом, с эухроматиновыми (генетически активными) участками. В хромосоме имеются как бы «слабые места», по которым с наибольшей вероятностью происходят разрывы и последующие слияния[681]. В результате возможно независимое возникновение в разных частях ареала гомологичных хромосомных мутаций. Так, в надвиде рыжих полевок (Clethrionomys glareolus) независимая фиксация акроцентрического варианта Y-хромосомы вместо обычного метацентрика произошла в краевых популяциях юга Италии, Югославии и на Тянь-Шане. У близкого вида — красной полевки (Cl. rutilus) отмечена гомологическая мутация Y-хромосомы в популяциях Южного Алтая и Забайкалья. Неравновероятность хромосомных перестроек по длине хромосом резко повышает вероятность встречи «частых» хромосомных мутаций (типа разрывов на границе эухроматина и гетерохроматина или деления гетерохроматиновых участков) и снижает вероятность встречи «редких» хромосомных мутаций (типа разрывов аутосом по эухро-матиновым районам).
Еще четверть века назад представлялось, что спонтанный мутационный процесс, ведущий к возникновению хромосомных перестроек, идет монотонно, т. е. вероятность появления новых хромосомных мутаций из года в год одинакова. Открытие влияния вируса болезни Боткина на резкое повышение частоты хромосомных мутаций у человека было началом отказа от представлений о равномерности темпов возникновения хромосомных мутаций. Вслед за этим был обнаружен мутагенный эффект вирусов кори, энцефалита, гриппа и других вирусных заболеваний, ведущих к резкому возрастанию частоты хромосомных аберраций в популяциях человека и других видов. Эти факты дали основание выступить с гипотезой об эволюционной роли вирусных пандемий как поставщиков хромосомных мутаций[682]. Вирусные пандемии, прокатываясь через ареал вида, оставляют за собой шлейф хромосомных мутаций, частота которых повышается на несколько порядков. Вслед за этим наступает депрессия численности вида, распадение единого ареала на серию изолятов — стаций переживания. В этих условиях особи — носители новых хромосомных мутаций оказываются не уникумами среди сплошь панмиктичной популяции с нормальным кариотипом, а почти равноправными членами популяций с ограниченной численностью особей.
В момент формирования гипотезы о роли вирусных пандемий как поставщика хромосомных мутаций еще не было ясно, равновероятно ли по длине хромосомы распределяются разрывы. Теперь мы знаем, что эти разрывы распределяются неравномерно и что шансы на встречу особей с одинаковой хромосомной мутацией непосредственно после вирусной пандемии резко повышаются. Мутации, вызываемые вирусной пандемией, достаточно однообразны — обычно это разрывы по границе гетерохроматина с эухроматином или делеции/дупликации гетерохроматиновых участков. Число наиболее обычных вариантов таких мутаций всегда меньше числа пар хромосом, и, как правило, они приурочены к небольшому, строго ограниченному числу хромосом и к достаточно строго локализованным участкам этих хромосом. Вслед за «плотным шлейфом» хромосомных аберраций с высокой частотой появления следует «разреженный шлейф» хромосомных мутаций с низкой частотой появления. Естественно, что шансы на встречу Особей — носителей двух одинаковых по локализации разрывов или слияний хромосомных мутаций сразу же вслед за вирусной пандемией крайне невелики. Однако и такая единичная особь — носитель редкой хромосомной мутации — может стать основателем новой кариоморфы.
Судьба единичных хромосомных мутаций робертсоновского типа
Робертсоновским процессом называется процесс слияния двух акроцентрических (одноплечих) хромосом в одну метацентрическую (двуплечую) или диссоциации одного метацентрика с образованием двух акроцентриков. Второе в силу чисто цитологических причин менее вероятно. Э. Майр[683] был, безусловно, прав, когда говорил о малой вероятности встречи особей, у которых независимо друг от друга возникла бы одинаковая хромосомная мутация. Однако сейчас стало ясно, что существуют пути распространения в популяции единичной хромосомной мутации. Один из таких путей, связанный с возникновением мутации половых хромосом, был рассмотрен нами ранее[684].
В нашей лаборатории было изучено значение робертсоновских перестроек для становления и поддержания репродуктивной изоляции на примере разнохромосомных кариоморф слепушонок[685]. Как подчеркивается в обзоре Е. А. Ляпуновой, возникновение хромосомной мутации, ведущей к абсолютной изоляции от исходной кариоморфы, в подавляющем большинстве случаев заканчивается гибелью данной мутации из-за отсутствия соответствующего брачного партнера.
Иной оказывается ситуация в случае частичной репродуктивной изоляции. Представим себе, что у вида с 2n=54, где все хромосомы акроцентрические, возникла робертсоновская транслокация в клетках зародышевого пути, уменьшившая гаплоидное число хромосом с 27 до 26. Гамета с п=26 + гамета с нормальным гаплоидным набором «=27, сливаясь, дают зиготу с 2n=53. Поскольку робертсоновские транслоканты характеризуются генетически сбалансированными хромосомами (набор генов в двух акроцентриках равен набору генов в одном метацентрике), то жизнеспособность такого робертсоновского транслоканта может быть не нарушенной. Имеется обширный материал по робертсоновским транслокациям у мышей, свидетельствующий о различной жизнеспособности разных комбинаций хромосом[686]. Получены данные, говорящие о повышенной на 30—44% жизнеспособности гетерозиготных по робертсоновской транслокации слепушонок по сравнению с жизнеспособностью одной из исходных форм[687]. У гетерозиготной по робертсоновской транслокации особи с 2n=53 мейоз будет происходить с частичными нарушениями. Исследование синаптонемных комплексов (Ск) в профазе I деления мейоза у гибридов разнохромосомных форм слепушонок[688] показало, что у форм, отличных по одной робертсоновской транслокации, образуется тривалент, который затем может дать как сбалансированные, так и несбалансированные гаметы. Несбалансированные гаметы либо детальны сами, либо не могут дать жизнеспособные зиготы. Однако в случае расхождения по дочерним цитам II порядка одного метацентрика в одну клетку и двух акроцентриков в другую образуются жизнеспособные гаметы. 50% таких гамет от особи с 2n=53 будет иметь 27 хромосом, а 50% — 26.
Повышенная жизнеспособность гетерозигот по робертсоновским перестройкам может частично компенсировать повышенную смертность зигот за счет нежизнеспособных хромосомно несбалансированных вариантов. Ясно, что за счет неабсолютности репродуктивной изоляции между вновь возникшей и старой кариоморфами в изолированных и полуизолированных демах могут случайно накапливаться гетерозиготы по робертсоновским транслокациям. При скрещивании 53x53 будет происходить расщепление 1 (52): 2 (53): 1 (54). Хромосомно гомозиготные формы (52 и 54) не имеют той пониженной плодовитости, которая свойственна гетерозиготным формам. Ясно, что состояние популяции, в которой присутствуют формы с 2п—52, 53 и 54, неустойчиво. Возникновение любой мутации (включая поведенческую), способствующей распознаванию 52- и 54-хромосомных форм, или случайное пространственное разобщение 52- и 54-хромосомных форм по соседним микроучасткам будут способствовать снижению частоты образования гетерозиготных 53-хромосомных форм с их повышенной гибелью гамет и поддерживаться отбором.
Таким образом, неабсолютность репродуктивной изоляции робертсоновских транслокаций является, как говорят дипломаты, гарантом их выживаемости. Эта неабсолютность репродуктивной изоляции способствует в условиях нарушения панмиксии повышению частоты единично возникшей мутации в отдельных демах.
Случаи быстрой хромосомной дивергенции в природе — «робертсоновские веера».
Уникальной моделью хромосомного видообразования в природе служат так называемые «робертсоновские веера». Это понятие было предложено швейцарским классиком цитогенетики Робертом Маттеем (1900—1981) для обозначения широкой хромосомной изменчивости робертсоновского типа, когда в пределах вида обнаруживается практически полный набор теоретически ожидаемых хромосомных чисел. Первый такой веер был открыт для мышей рода Leggada[689]. В тропической Африке обнаружен почти полный веер форм с 2n от 36 (все хромосомы акроцентрические) до 18 (все хромосомы — метацентрики). Однако эта широкая дивергенция наблюдается на обширной территории и не смогла быть изучена достаточно подробно.
Второй веер был открыт германским цитогенетиком Альфредом Гроппом и итальянским зоологом, гистологом и генетиком Эрнесто Капанна[690]. Эти исследователи обнаружили значительную изменчивость робертсоновского типа у домовых мышей Mus domesticus надвида Mus musculus на территории Альп и Апеннинского полуострова, где хромосомные числа варьируют от обычного для вида 2n=40 (все хромосомы — акроцентрики) до 2n=22. Было показано, что между разными робертсоновскими вариантами кариотипа мышей существует репродуктивная изоляция разного уровня[691].
Третий веер был обнаружен в нашей лаборатории у роющих грызунов — слепушонок группы Ellobius tancrei, относящихся к надвиду Ellobius talpinus. Этот случай хромосомного полиморфизма уникален. Робертсоновский веер слепушонок (рис. 259) отличается от такового у африканских леггад и апеннинских мышей весьма узкой локализацией зоны широкой изменчивости хромосом. На большей части ареала надвида Е. talpinus от Украины на западе до Манчжурии на востоке, от Копетдага на юге до степей Западной Сибири на севере представлены лишь две кариоморфы: Е. talpinus s. str. (2n=NF=54, этот вид характеризуется стабильным кариотипом) и Е. tancrei (2n=54, NF=56).
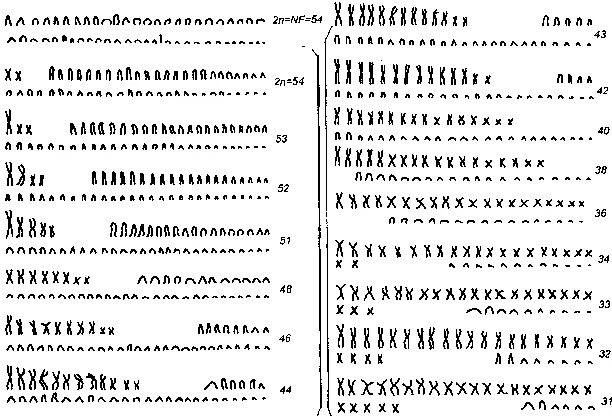
Рис. 259. Робертсоновский веер и хромосомное видообразование у роющих грызунов — слепушонок надвида Ellobius talpinus. Верхняя форма слева — E. talpinus s. str. — хромосомный вид, распространенный от Украины до Зауралья (2n=NF= 54, диплоидное число хромосом равно числу плеч). Вторая форма слева — E. tancrei — кариоморфа, распространенная от Аму-Дарьи до Монголии (кроме долины Вахша-Сурхоба в Таджикистане и высокогорий в Киргизии), 2n=54, NF=56 (в первой зоне хромосом произошла инверсия — поворот участка хромосомы на 180° при неизменном генном составе увеличилось число плеч от NF=54 до NF=56). Все остальные кариоморфы с 2n от 51 до 31 при неизменном NF=56 произошли за счет робертсоновского слияния хромосом и, быть может, гибридизации в одной долине Памиро-Алая, в долине рек Сурхоб-Вахш. Эти кариоморфы обладают частичной репродуктивной изоляцией, но не отличны морфологически и экологически.
По Е. A. Lyapunova et al. (1980) из Н. Н. Воронцова.
Иная ситуация наблюдается в узкой зоне гор Памиро-Алая и южного Тянь-Шаня от Душанбе на западе до оз. Чатыр-Кель на востоке. Здесь на базе кариотипа Е. tancrei с NF=56 сформировались многочисленные кариоморфы. Наибольшее разнообразие кариотипов наблюдается в узком участке долины рек Вахш—Сурхоб, где обнаружен полный робертсоновский веер кариоморф со всеми 25 возможными вариантами хромосомных чисел от 2n=54 до 2n=31[692]. Показано, что значительная часть этого хромосомного разнообразия возникла в результате ... зации относительно небольшого числа исходных вариантов. В настоящее время в природе обнаружены и географически локализованы зоны распространения кариоморф с 2n=32 (северный берег Вахша—Сурхоба), 2n=34 (южный берег Сурхоба), 2n=50 (высокогорья Гиссарского хребта у Ходжа-Оби-Гарма, северо-западные склоны хребта Петра Первого, крайний восток долины Сурхоба у Ачик-Альмы), 2n=52 (Алайская долина, Алайский хребет и сырты близ оз. Чатыр-Кель). Все остальные варианты встречаются в гибридных зонах.
Как возникли низкохромосомные варианты? Более просто было бы представить себе серию робертсоновских мутаций 54→52→50→48→36→34→32. Однако если распространение 52- и 50-хромосомных форм не противоречит этой гипотезе, то распространение форм с 48—36 хромосомами лишь в зонах интрогрессии явно с ней не согласуется. Вот почему можно допустить, что эволюция от 54-хромосомного к 50-хромосомному кариотипу шла за счет поэтапных робертсоновских транслокаций, тогда как 34- и 32-хромосомные кариотипы должны были возникнуть за счет резкой скачкообразной перестройки всего кариотипа в целом, приведшей к одномоментному слиянию 16—20 акроцентрических хромосом в 8—10 метацентриков. Благодаря неабсолютности репродуктивной изоляции между кариоморфами со столь разными диплоидными числами, появление 32-хромосомной формы могло стать предпосылкой для последующего возникновения всего робертсоновского веера за счет гибридизации. Путем экспериментальной гибридизации в неволе был получен робертсоновский веер слепушонок[693]. Однако если в неволе гибриды между формами 54 и 34 характеризовались гетерозиготностью по 20 акроцентрикам —_10 метацентрикам у гибрида с 44 хромосомами, то в природе мы встречаем гетерозигот лишь по одной паре хромосом. Таким образом, веер, существующий в природе, и веер, полученный в неволе, не вполне тождественны друг другу.
Как соотносятся кариологические отличия с морфологическими? Если для Е. talpinus s. str. (2n=NF=54) и E. tancrei (2/2=54, NF=56) были обнаружены и морфологические различия в строении зубов, в окраске меха[694], то для форм робертсоновского веера Вахша—Сурхоба мы не обнаружили морфологических отличий между разными кариоморфами, не было также обнаружено частотных отличий в спектрах изозимов. Таким образом, в случае робертсоновских вееров мы наблюдаем четкое опережение темпов хромосомной эволюции по сравнению с темпами эволюции как на генном, так и на морфологическом уровнях[695]. Вместе с тем ясно, что существование частичной репродуктивной изоляции между кариоморфами, определяемой в 2—3% летальности гибридов между вариантами с близкими хромосомными числами и доходящей до 50% у форм с крайними кариотипами, создает предпосылки для дивергенции кариоморф по их экологии, этологии, морфологии, частотам аллелей[696].
В последние годы в нашей лаборатории был открыт и исследован еще один робертсоновский веер у субальпийских кустарниковых полевок (Pitymys) Кавказа и Закавказья[697].
С теоретической точки зрения возникновение новой кариоморфы, репродуктивно изолированной (частично) от родительской формы, является процессом скачкообразным. Особенно следует подчеркнуть тот факт, что у слепушонок мы встречаем отдельные полиморфные по числу хромосом популяции. Так, на сыртах Тянь-Шаня в одной популяции встречаются особи с 52, 51 и 50 хромосомами, на хребте Петра Первого — с 50, 49 и 48 хромосомами. Ясно, что такие популяции неустойчивы, и то, что их удается обнаружить в природе, достойно удивления. Поскольку экологически особи с разными числами хромосом одинаковы, занимают одну и ту же нишу, то, в соответствии с правилом Г. Ф. Гаузе, одна из кариоморф со временем неминуемо вытеснит другую. Существование частичной репродуктивной изоляции между разными кариоморфами дишь ускорит процесс конкурентного взаимоисключения. Таким образом, в результате действия процесса конкурентного взаимоисключения разные кариоморфы довольно быстро станут вторично аллопатричными.
Сторонники существования одной лишь аллопатрической формы видообразования в своих доводах нередко упускают, что аллопатрия может быть вторичной, и рассматривают результаты конкурентного взаимоисключения экологически близких, но репродуктивно изолированных форм как свидетельство в пользу аллопатрического видообразования. Нетрудно видеть, что здесь следствие путается с причиной.
Постепенный или прерывистый характер носит видообразование за счет перестроек хромосом? Несомненно, что становление хромосомной мутации, возникновение репродуктивной изоляции — процесс скачкообразный. Однако морфологическая дивергенция репродуктивно изолированных видов-двойников может существенно отставать по своим темпам от хромосомной дивергенции, может идти постепенно. В самом деле, если возникла вторичная аллопатрия хромосомно дивергировавших кариоморф и даже если прошел отбор на возникновение этологической изоляции этих кариоморф, совершенно не обязательно, что темпы морфологической эволюции этих видов-двойников окажутся более высокими, чем разных подвидов одного вида. Ведь эти виды-двойники могут занимать близкую нишу, и в этом случае они будут испытывать сходно направленное давление отбора и эволюировать постепенно, параллельно и в одном и том же направлении.
Роль хромосомного видообразования
За последние два десятилетия накоплен огромный материал по хромосомным наборам нескольких тысяч.видов животных[698]. Еще недавно считалось, что роль хромосомных мутаций в видообразовании животных ограничена. Предполагалось, что видообразование происходит за счет географической изоляции, дивергенции изолированных популяций по мелким мутациям и лишь на завершающей стадии возникает система барьеров изолирующих механизмов эволюции, среди которых определенная роль отводилась и хромосомным различиям.
В противовес этой точке зрения автор[699] выдвинул предположение о существовании двух путей видообразования: а) «обычного» — связанного с постепенным накоплением межпопуляционных различий и завершающегося возникновением репродуктивной изоляции; б) «генетического» — начинающегося с возникновения репродуктивной изоляции за счет хромосомных перестроек до возникновения генных и экологических различий. Последняя форма была названа М. Уайтом стасипатрическим видообразованием[700].
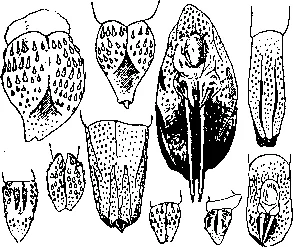
Рис. 260. Резкие отличия в строении головки члена (glans penis) у тушканчиков сочетаются с удивительным сходством в строении хромосом. Возможно, что изоляция по строению гениталий сделала излишней дивергенцию по хромосомам в данной группе.
Из В. С. Виноградова (1937).
Для разных групп характерно преобладание разных механизмов видообразования. Такие группы, как лягушки и тушканчики, например, характеризуются поразительным однообразием хромосомных наборов: у большинства лягушек[701] 2п=24, у тушканчиков[702] (за двумя исключениями) 2n=48, у всех видов летучих мышей рода Myotis[703] 2n=44. Очевидно, что дивергенция в этих группах, поддержание репродуктивной изоляции обеспечивается иными, нехромосомными механизмами. Для тушканчиков, например, характерно крайнее развитие видовых отличий в строении гениталий[704] (рис. 260), особую роль в поддержании репродуктивной изоляции у многих амфибий и птиц играет поведенческая и сезонная изоляция.
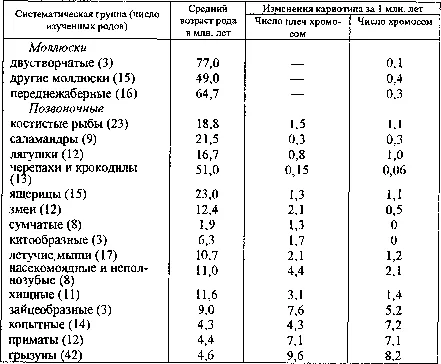
В эволюции многих групп млекопитающих, в особенности грызунов (за исключением тушканчиков), приматов, непарнокопытных, характеризующихся особо высокими темпами эволюции, исключительную роль играет хромосомное видообразование[705]. Темпы видообразования у млекопитающих находятся в прямой корреляции с темпами изменений хромосом (табл. 6).
В качестве примера видообразования, начинающегося с преобразования хромосом, приведем уже упоминавшегося роющего грызуна слепушонку надвида Ellobius talpinus. В одной из долин Памиро-Алая (в долине рек Сурхоб— Вахш) этот вид дает поразительную вспышку разнообразия хромосомных вариантов. На участке ареала длиной в 150 км наблюдается 16 кариоморф с 2n=31—54. Эти кариоморфы, возникающие за счет робертсоновского слияния одноплечих акроцентрических хромосом в двуплечие метацентрические, морфологически неотличимы друг от друга, они неотличимы и по частотам электрофоретических вариантов белков, но за счет различий в числе хромосом между ними уже существует репродуктивная изоляция. В данном случае видообразование начинается с возникновения репродуктивной изоляции, т. е. именно так, как было постулировано нами более 35 лет назад[706].
Таблица 6. Темпы хромосомной эволюции в политипических родах моллюсков и позвоночных
Чем же отличается долина Сурхоба—Вахша в Таджикистане от других долин? Почему именно здесь обнаруживается столь широкая изменчивость хромосом? Дело в том, что по этой долине проходит крупнейший в Евразии тектонический разлом. Здесь гондванская по происхождению плита Индостана, некогда «приплывшая» к Азии, уходит под Азиатскую плиту. Район обнаружения робертсоновского веера кариоморф полностью лежит в зоне 9-балльной сейсмичности. При этом область наибольшего разнообразия 2n четко очерчивается изолинией средней периодичности землетрясений силой 9 и более баллов, равной 500—1000 лет.
Подробный анализ ряда случаев резкого увеличения хромосомной изменчивости внутри популяций позволил подтвердить эту зависимость. В Италии высокая лабильность кариотипа домовых мышей Mus musculus, о которой говорилось выше, также приурочена к сейсмически наиболее активным районам. Вспышки хромосомной изменчивости у слепышей надвида Spalax ehrenbergi наблюдаются в области рифта, идущего от Великих Африканских озер и Красного моря через Мертвое море, долину Иордана и Тивериадское озеро. Вспышки хромосомной изменчивости у надвида Spalax leucodon связаны с сейсмически активными областями Балкан и Турции. В то же время другие виды слепышей (Sp. microphthalmus, Sp. arenarius, Sp. polonicus, Sp. gigantheus), обитающие в сейсмически спокойных областях от Украины до Урала, хромосомно мономорфны[707]. Еще до катастрофического землетрясения в Спитаке мы указали на связь широкой изменчивости хромосом у субальпийской полевки Pitymys daghestanicus с сейсмически активными районами Закавказья[708]. Широкая изменчивость хромосом у американского роющего грызуна — гофера надвида Thomomys talpoides и у грызунов рода Proechimys также связана с сейсмически активными районами.
Вспомним, что кариотип человека (2n=46) отличается хромосомными перестройками от кариотипа его ближайших родичей — двух видов шимпанзе и гориллы (у них 2n=48). Есть все основания полагать, что 2/2=48 было исходным числом хромосом, общим для предков человекообразных, австралопитеков и человека. В крайне сложном и многофакторном процессе антропогенеза не последнюю роль должны были играть хромосомные мутации, обеспечившие репродуктивную изоляцию предков человека от их ближайших родичей, сохранивших в карйотипе 48 хромосом. Исходя из приведенных в начале этой книги данных о находках ранних ископаемых гоминид, можно предположить, что перестройки, обеспечившие переход от 48-хромосомного к 46-хромосомному кариотипу происходили в сейсмически активной области Великого Африканского рифта.
Напомним, что наиболее высокие темпы видообразования (о роли хромосомных мутаций в этом процессе пока нет данных) для замкнутых водоемов отмечены у фауны озер Байкал[709], Танганьика и расположенного на Балканах озера Охрид[710]. Байкал и Танганьика лежат в сейсмически активных рифтовых зонах, Охрид — в высокосейсмичной Балканской зоне.
Каковы же причины высокой изменчивости хромосом в сейсмических районах? С тектоническими разломами связан целый букет мутагенных факторов: γ-излучение, высокая концентрация радоновых вод, солей тяжелых металлов и т. п. Несомненно также, что в сейсмических районах чаще, чем в несейсмических, происходит изоляция популяций или их частей — за счет обвалов, селевых потоков, изменения русел рек, что создает особо благоприятные условия для фиксации новых хромосомных мутаций и ускоряет темпы видообразования.
Разумеется, сейсмичность — не единственный экзогенный фактор, ведущий к повышенной изменчивости хромосом. Выше уже говорилось о роли вирусных инфекций в возникновении хромосомных повреждений. После вирусных пандемий численность популяции уменьшается и она вступает в новый экологический цикл, отягощенная значительным числом разнообразных хромосомных мутаций[711].
Существенно отметить, что хромосомные перестройки робертсоновского типа (2A→1M), инверсии участков хромосомы (т. е. перевороты участка хромосомы на 180°) не изменяют генного состава, здесь эволюция не затрагивает структурных генов, она вообще идет без точковых мутаций.
Другой важной формой преобразования хромосом в эволюции являются перестройки временно неактивных, так называемых гетерохроматиновых участков хромосом. Выпадения (делеции) и удвоения (дупликации) гетерохроматиновых участков играют важную роль в хромосомной эволюции. Многие случаи внутрипопуляционного хромосомного полиморфизма у млекопитающих[712] связаны именно с изменчивостью гетерохроматиновых районов. Как уже говорилось, граница между гетерохроматиновым блоком и соседствующим эухроматиновым участком является той границей, по которой проходят разрывы хромосом[713]. На сусликах показана корреляция ряда видов, расположенных по степени уменьшения количества гетерохроматина, с рядом, расположенным по степени уменьшения фракции так называемых промежуточных повторов ДНК[714].
Весьма вероятно, что у млекопитающих с высоким темпами хромосомной эволюции дальнейшая генетическая дивергенция идет в большей степени за счет дивергенции ограниченного числа регуляторных генов, а не за счет накопления множества мутаций структурных генов.