Вопрос об адаптивности и нейтральности признаков активно обсуждался в литературе начиная с Ч. Дарвина. Вторая волна интереса к этой проблеме наблюдалась в середине 20-х годов XX века, когда зародилась генетика природных популяций (С. С. Четвериков и его школа). Третья волна возникла после открытия вырожденности генетического кода, что датируется концом 50-х годов, и после эволюционного осмысления вытекающих из этого открытия следствий[581]. Вкратце остановимся на предыстории вопроса, так как знание ее может в какой-то степени пояснить истоки и причины продолжающихся по сей день споров вокруг этой проблемы[582].
Одним из основных тезисов теологии было представление о целесообразности всего мироздания и, в частности, о разумности, целесообразности живого мира. Дарвинизм дал материалистическое объяснение эволюции органического мира. Пропагандисты учения Дарвина и в особенности его популяризаторы, в отличие от самого Дарвина, сосредоточили свое внимание на попытках объяснения селекционистского происхождения каждого из признаков живого организма, тогда как для Дарвина центром проблемы оставалось происхождение новых систематических единиц, происхождение органического разнообразия, а не отдельных признаков, которые служат лишь маркерами той или иной систематической категории.
Биологи последарвиновской генерации, принявшие учение Дарвина, нередко ошибочно видели суть этого учения в «объяснении органической целесообразности». Так вышло, что понятие «органической целесообразности» из теологии и теософии («вот как разумно создан мир Божий, как разумно организованы живые существа!») перекочевало в естествознание. Некоторые биологи и по сей день видят суть учения Дарвина не в том, что он объяснил возможность происхождения видов на основе принципа естественного отбора, а в том, что Дарвин вскрыл причины «органической целесообразности». Вместе с тем такого понятия, как «целесообразность», у Дарвина нет, оно приписано Дарвину не в меру усердными популяризаторами его учения. Именно в процессе переработки теории Дарвина, превращения ее в хрестоматийную концепцию дарвинизма возникло представление о том, что любой признак в организме целесообразен, имеет в каждый заданный момент исторического или индивидуального развития адаптивное значение. Рассмотрим, как относились к проблеме адаптивности и нейтрализма эволюционные и популяционные генетики 20—30-х годов[583].
Проблема адаптивности и нейтрализма в трудах С. С. Четверикова, его школы и современников
Нельзя не вспомнить о том, что писал С. С. Четвериков[584] о проблеме адаптивности и инадаптивности в своей классической работе, революционизировавшей эволюционное мышление:
«На примере Am. betularia L. (—Biston betularia L., березовая пяденица — Н. В.) мы проанализировали случай адаптивной эволюции. Но возможны ли вообще в природе неадаптивные эволюционные процессы? Вот вопрос, который до сих пор остается открытым и спорным.
Систематика знает тысячи примером, где виды различаются не адаптивными, а безразличными (в биологическом смысле) признаками, и стараться подыскивать им всем адаптивное значение — работа столь же малопроизводительная, сколь и неблагодарная, где подчас не знаешь, чему больше удивляться: бесконечному ли остроумию самих авторов или их вере в неограниченную наивность читателей.
Таким образом, для защитников исключительно адаптивной эволюции остается последнее прибежище — соотносительная изменчивость, и к ней приходится прибегать каждый раз, когда пытаются строить весь процесс эволюции исключительно на основе борьбы за существование и на естественном отборе. В том, что соотносительная изменчивость существует, не может быть сомнения, и современная генетика дает нам для ее понимания совершенно новую основу в учении о “плейотропном действии” генов. Но все же объяснять все бесчисленные случаи безразличных, не адаптивных видовых отличий такого рода изменчивостью, значит ничего не объяснять, а удовлетворяться каждый раз просто недоказуемой гипотезой» (Четвериков, 1926. Цит. по: Четвериков[585], с. 207; курсив С. С. Четверикова).
Более того, С. С. Четвериков счел необходимым вновь подчеркнуть идею нейтрализма в выводах:
«17. У нас нет основания отрицать возможность неадаптивной эволюции. Напротив, во многих случаях можно предполагать, что существующие адаптивные различия между близкими формами были не причиной расхождения последних, а напротив, специфический характер этих адаптивных признаков является следствием уже ранее наступившего обособления форм. Чем древнее наступившее расхождение, тем больше адаптивных черт будет отличать одни формы от других» (с. 216—217; курсив С. С. Четверикова).
Идеи С. С. Четверикова о возможности дивергенции видов по нейтральным, а не адаптивным признакам нашли свое развитие в трудах создателей генетики популяций. Именно на основе этих идей Р. Фишер и С. Райт развили представление о дрейфе генов, а ученики и последователи Четверикова — Д. Д. Ромашов и Н. П. Дубинин, независимо от Фишера и Райта и в иной форме, развили теорию процессов, названных ими генетико-автоматическими и известных также как стохастические.
Р. Фишер в своей «Генетической теории естественного отбора»[586], С. Райт в статье «Эволюция в менделевских популяциях»[587], Д. Д. Ромашов и Н. П. Дубинин в трех статьях 1931—1932 годов, опубликованных в кольцовском «Журнале экспериментальной биологии»[588], в той или иной степени затрагивали проблему, поставленную С. С. Четвериковым.
В 1931 году Д. Д. Ромашов в статье «Об условиях “равновесия” в популяции» обратил особое внимание на неприспособительные, инадаптивные процессы в популяциях. Д. Д. Ромашов был, по-видимому, первым биологом, объединившим эволюционно-генетические идеи С. С. Четверикова с математическими идеями А. А. Маркова в популяционных исследованиях. Д. Д. Ромашов был связан школьной дружбой с математиком А. Н. Колмогоровым, с которым он консультировался по теории случайных процессов и от которого мог воспринять основные идеи и подходы великого отечественного математика Андрея Андреевича Маркова-старшего (1856—1922). А. А. Марков еще в 1907 г.[589] разработал в абстрактной математической форме теорию случайных процессов, получившую известность как «теория марковских Процессов», и связанную с ней теорию «марковских цепей».
Теория «марковских цепей» исследует лишь такие системы, которые могут менять свое состояние не непрерывно, а в определенные, относительно дискретные промежутки времени, Такой системой, например, являются популяции, в которых пик размножения приходится на весну, а пик смертности — на период зимовки. В 1930-х годах общую теорию марковских процессов разрабатывал А. Н. Колмогоров. Начало ее приложениям в биологии, имевшим революционизирующее значение, положили работы Д. Д. Ромашова и Н. П. Дубинина (1931).
Уже в работе Д. Д. Ромашова 1931 г., в опубликованной в следующем номере кольцовского «Журнала экспериментальной биологии» статье Н. П. Дубинина, а затем в знаменитой статье Н. П. Дубинина и Д. Д. Ромашова 1932 г. фактически были описаны такие популяционные феномены, как «эффект бутылочного горлышка» и то, что мы теперь, вслед за Э. Майром, называем «принципом основателя»[590] (подробнее см.: Бабков, 1983[591]), следующие из четвериковских «волн жизни»[592], из генетикоавтоматических процессов Дубинина—Ромашова и из «дрейфа генов» Фишера—Райта—Холдейна. Английский эколог Ч. Элтон еще в 1924 г. предположил, что колебания численности могут вести к распространению в популяции нейтральных («неадаптивных») признаков[593]. «Загадка того, почему различия между близкими видами неадаптивны (т. е. загадка происхождения видов), — писал Элтон (1934, с. 65), — все еще ждет своего объяснения». Д. Д. Ромашов обратил внимание на существование инадаптивного популяционного полиморфизма и на возможность дивергенции популяций по инадаптивным признакам за счет «ошибок выборки», т. е. за счет стохастических процессов. Объединение таланта и энергии Д. Д. Ромашова и Н. П. Дубинина привело к появлению их классической работы «Генетическое строение вида и его эволюция» (1932).
Что было известно в пору «золотого века» генетики об адаптивности или инадаптивности отдельных аллелей? Немало. Н. В. Тимофеев-Ресовский при изучении относительной жизнеспособности особей — носителей отдельных мутаций у Drosophila funebris показал, что признак, безусловно адаптивный при одних условиях, становится нейтральным при других[594]. Так, мухи с мутацией eversae при температуре 15—16°С имеют среднюю жизнеспособность 98,3% (по сравнению с жизнеспособностью мух «дикого типа» при данной температуре, принимаемой за 100%), при 24—25°С жизнеспособность мух повышается до 104%, а при 28—30°С вновь снижается до 98,5%. Отсюда следовало, что для данной мутации существуют два диапазона температур (»20°С и «26—27°С), внутри которых жизнеспособность мух дикого типа и мух — носителей мутации eversae одинакова и данная мутация ведет себя как нейтральный признак[595].
Совершенно ясно, что раз данный аллель имеет некий градиент приспособленности, варьирующей от «плюс-приспособленности» (фенотипы — носители данного аллеля обладают селективным преимуществом по сравнению с другими фенотипами) до «минус-приспособленности (фенотипы — носители данного аллеля статистически имеют больше шансов на элиминацию), то в этом градиенте приспособленностей есть и нулевая точка, при которой даже адаптивный признак может иметь равновероятные шансы на выживание или гибель в сравнении с исходным аллелем[596].
Таким образом, даже признаки, имеющие явно приспособительное значение и при одних условиях контролируемые естественным отбором, в других условиях могут выходить из-под его контроля. Эти признаки в условиях временной нейтральности будут распространяться в популяциях или исчезать из них за счет действия стохастических или генетико-автоматических процессов[597].
Как различать: адаптивны или нейтральны аллели и кодируемые ими признаки?
Мы должны признать, что на практике решить этот вопрос очень трудно. Здесь возможно использование лишь косвенных свидетельств.
Большая широта изменчивости одного признака по сравнению с другим (при этом очень важно сопоставлять лишь сопоставимые признаки!) может свидетельствовать в пользу сравнительно большей нейтральности его по отношению к отбору. Так, например, у грызунов наибольшей изменчивостью характеризуются задний верхний коренной и передний нижний коренной зубы, причем самые задние отделы последнего верхнего и самые передние отделы переднего нижнего коренного зуба. Как было показано, при сдвиге зубных рядов относительно друг друга, когда нижняя челюсть движется вперед, именно эти наиболее изменчивые участки зубной системы оказываются нефункционирующими. Ограниченность функционирования упомянутых отделов зубной системы ведет к тому, что они ускользают из-под контроля стабилизирующей (а в ряде случаев и движущей) формы отбора, их онтогенез дестабилизируется за счет того, что отклоняющиеся от нормы вариации мало функционирующих частей органа не отсеиваются отбором (подробнее см.[598]). Таким образом, сопоставление диапазонов изменчивости подлежащих сравнению признаков (например, разных коренных зубов, разных отделов одного зуба и т. п.) может быть одним из косвенных методов идентификации функциональной значимости или нейтральности признака.
Вторым методом, тесно связанным с предыдущим, может быть выявление компенсирующих и компенсируемых признаков, о чем подробно говорилось выше. В случае, если неравномерность темпов преобразования органов не служит способом достижения эврибионтности в разные сезоны, естественно полагать, что компенсирующий орган в большей степени может считаться адаптивным и находящимся под контролем отбора, нежели компенсируемый, который на данном этапе филогенеза таксона может вести себя как нейтральный признак.
Третьим методом, также дающим лишь косвенные данные, служит фено- и геногеографический анализ популяций. Обычно наличие клинального характера изменчивости рассматривается как свидетельство в пользу адаптивности того или иного признака. Особенно впечатляет совпадение градиента изофен или градиента аллельных частот с градиентом каких-либо физико-географических условий. Это совпадение почти всегда принимается как безоговорочное доказательство адаптивного значения анализируемого признака[599].
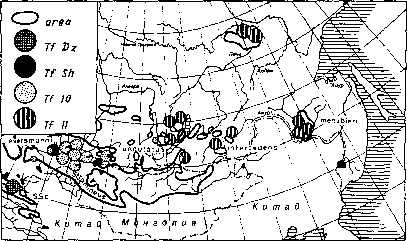
Рис. 254. Геногеография трансферринов длиннохвостого суслика (Spermophilus undulatus). Виден мономорфизм краевых популяций и изо-ятов в центре ареала.
По Vorontsov, Frisman et al. (1980) из Воронцова, 1967.
К сожалению, такой вывод может оказаться преждевременным. Клинальный[600] характер изменчивости может быть не только свидетельством адаптивности того или иного признака, но и результатом интрогрессивной гибридизации двух ранее изолированных популяций, приобретших в прошлом в условиях изоляции мономорфизм по разным аллелям одного гена, а ныне интеградирующих в широкой области при отсутствии существенных физико-географических барьеров.
Перерыв клины почти всегда говорит о недавнем возникновении контакта между ранее изолированными популяциями и о том, что фиксация разных аллелей в разных изолятах произошла случайно.
Рассмотрим некоторые примеры. На рис. 254 показаны частоты четырех аллелей трансферрина (Tf) в разных популяциях длиннохвостого суслика (Spermophilus undulatus). В краевом юго-западном изоляте на Джунгарском Алатау был обнаружен мономорфизм по аллелю Tfpz, нигде более в пределах ареала вида не обнаруженному. Данный случай, с нашей точки зрения, может с равным успехом рассматриваться и как подтверждение селекционистской гипотезы (ибо эта популяция живет на крайнем юго-западе ареала), и как результат фиксации редкого аллеля в условиях изоляции под влиянием генетикоавтоматических процессов. Наличие в нескольких восточных изолятах этого вида (Якутия, Приамурье, Забайкалье) мономорфизма по аллелю Т/ц, как нам кажется, не может быть истолковано с селекционистских позиций, поскольку условия обитания вида в этих изолятах резко различны. Более вероятно предположение о том, что в прошлом в восточной, еще не расчлененной части ареала за счет дрейфа фиксировался данный аллель, который затем сохранился в неизменном виде и после расчленения некогда единого ареала на серию изолятов. Зона перерыва клины по данному гену четко проявляется в районе Байкала.
На части ареала того же вида от Алтая до Саян в большинстве популяций преобладает аллель Т/ю, а в виде редкого встречается Tfsh Однако в одном из полуизолятов Горного Алтая мы наблюдаем преобладание аллеля Tfsh Поскольку условия обитания в этом полуизоляте, судя по всему, существенно не отличаются от других точек сбора материала, то правомочно толковать обнаруженные отличия как результат дрейфа нейтральных аллелей, а не пытаться объяснить этот случай с селекционистских позиций.
На рис. 255 показана геногеография аллелей трансферринов другого вида сусликов — арктического (Sp. paryi), изученного нами в серии советско-американских исследований, проводившихся с 1969 года. Обращает на себя внимание мономорфизм популяций Чукотки и прилежащих частей Аляски по Tf7, тогда как по мере удаления от приберенгийской области частота этого аллеля как в Сибири, так и в Америке снижается. Казалось бы, существование этого градиента частот свидетельствует в пользу селекционистской трактовки полученных данных. Однако 100%-ная частота встречаемости Tf7 в самой южной из американских популяций заставляет думать, что такой вывод был бы поспешным. Как было показано[601], мономорфизм по Tf6 и Tf7 в ряде американских популяций сформировался в изолятах, обособленных друг от друга покровным оледенением Канадского или Лаврентийского ледникового щита. На территории Сибири таких покровных оледенений не было, и поэтому не было столь ярко выраженных изолятов. Вот почему сегодня на территории Америки мы обнаруживаем ряд зон с перерывами клин, а в Азии — лишь одну слабо выраженную зону сгущения изофен у «бутылочного горлышка» — перешейка полуострова Камчатка. В данном случае более правдоподобным выглядит нейтралистское объяснение.
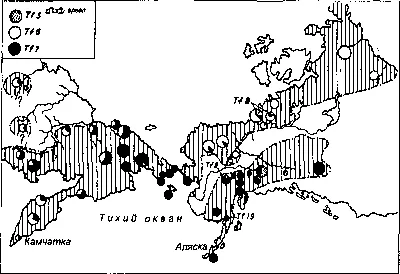
Рис. 255. Геногеография трансферринов арктического суслика Spermopfiilus paryi.
Из: Vorontsov, Frisman et al. (1980).
Рассмотрим теперь изменчивость окраски надкрылий у божьей коровки Harmonia axyridis. Окраска данного вида крайне полиморфна (рис. 256) за счет как генотипической, так и фенотипической изменчивости, а также мозаичного доминирования — своеобразного аналога процесса кодоминантности. Окраска надкрылий контролируется аллелями одного гена, ведущими себя за счет мозаичного доминирования как серия множественных аллеломорфов. Фено- и геногеографический анализ изменчивости показывает (рис. 257), что в пределах ареала вида существуют зоны резкого перерыва клин — в районе Байкала и Цусимского пролива. В последнем случае нарушение градиента частот, бесспорно, связано с изоляцией.
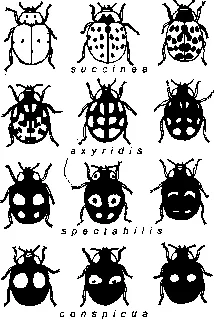
Рис. 256. Изменчивость рисунка надкрылий (элитр) у божьей коровки Harmonia (=Leis) axyridis. Все основные варианты окраски контролируются аллелями одного гена И. Число черных точек по красному фону у succinea (от 1 до 19) определяется фенотипической (неиаследственной) изменчивостью.
По Н. Н. Воронцову и А. В. Блехман (1986).
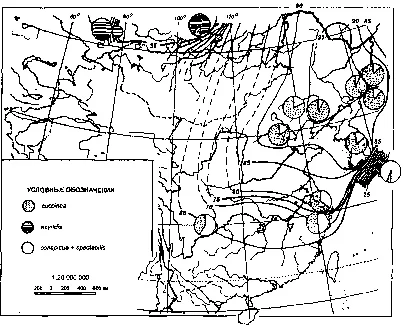
Рис. 257. Фено- и геногеография изменчивости окраски элитр у божьей коровки Harmonia axyridis на Азиатском континенте. В секторах — частоты фенотипов. Изоаллели — частоты рецессивного аллеля И в популяциях. Обратите внимание на клинальный характер смены частот на континенте и на зону разрыва клин между Кореей и Японией.
Из Н. Н. Воронцова (1983, 1988).
Климатические и иные природные условия Японских островов вряд ли столь существенно отличны от условий обитания данного вида на Корейском полуострове и в Приморье, чтобы этой разницей в условиях можно было объяснить кардинальные различия в частотах аллелей на континентальном Дальнем Востоке и на его островах. Вместе с тем на островах Дальнего Востока от Кюсю и Сикоку через Хонсю и Хоккайдо к Кунаширу существует отчетливо выраженный градиент изменчивости частот окраски (преобладание темноокрашенных форм на юге и снижение частоты этих форм на севере). Интересно, что этот градиент не нарушается такими физико-географическими преградами, как Сонгарский пролив или пролив Лаперуза. Как мы знаем, еще в конце плейстоцена все эти острова были частью единого большого острова. Вероятно, 18 тысяч лет, прошедших после обособления этих островов друг от друга, оказалось недостаточно для протекания в условиях довольно больших островов дрейфа генов, который бы мог нарушить явно селективную картину градиента аллелей с юга на север.
Все рассмотренные примеры лишь подтверждают уже высказанный в общей форме тезис: эволюция — сложный процесс, зависящий от множества факторов. Сводить все многообразие факторов эволюции (материальные факторы эволюции: мутационный процесс и процессы рекомбинации; движущие факторы эволюции: естественный отбор, изоляция, четвериковские «волны жизни» и связанные с ними генетико-автоматические процессы, молекулярный драйв, мейотический драйв и другие стохастические процессы) к одному лишь естественному отбору — примерно то же, что пытаться навязать многоликой популяции в обязательном порядке ношение респектабельного фрака. Б. Л. Пастернак отмечал, что был у нас период, когда Маяковского внедряли насильно, как картофель в России в XVIII веке, в чем Маяковский повинен не был. Конечно же, и великий Дарвин не повинен в том, в каком виде пытаются представить его учение некоторые популяризаторы. С другой стороны, имевшие место в начале 70-х годов попытки противопоставить нейтралистские процессы «недарвиновской эволюции» теории естественного отбора равносильны попытке введения для ношения в обязательном порядке одного какого-нибудь экстравагантного платья.
Как я пытался показать выше, дискретность и континуальность, целостность и мозаичность, адаптивность и нейтрализм, детерминизм и стохастика неразрывно связаны в эволюционном процессе друг с другом. Вопрос «или—или» является ложным противопоставлением, он должен быть заменен на «и—и».
Нейтрализм и «недарвиновская эволюция»
Открытие вырожденности генетического кода цовлекло за собой эволюционную оценку этого явления. Существование избыточного числа кодонов информационной РНК (комплементарных соответствующим триплетам азотистых оснований ДНК) есть эволюционный механизм помехоустойчивости генетического кода. Характерно, что наибольшая степень вырожденности характерна для кодонов, шифрующих синтез наиболее распространенных аминокислот. Поскольку одну аминокислоту кодируют несколько вариантов кодонов (для аргинина, например, ЦГУ, ЦГЦ, ЦГА, ЦГГ, АГА и АГГ), то не всякая мутация замены одного нуклеотида другим приведет к замене соответствующей аминокислоты в полипептидной цепи.
На рис. 258 приведен возможный спектр мутаций кодона ГЦА, кодирующего синтез аланина. Вследствие вырожденности кода 9 мутаций замещения могут привести к образованию кодонов, ответственных за синтез лишь 6 аминокислот. Мутации 4—6 в силу вырожденности не приведут к изменению аминокислотного состава полипептидной цепи. Таким образом, мутации 4—6 оказываются нейтральными и выпадают из-под контроля естественного отбора.
Открытие молекулярного механизма нейтральных мутаций позволило М. Кимуре[602], а также Д. Кингу и Т Юкесу[603] выступить с гипотезой недарвиновской эволюции, т. е. эволюции нуклеотидного состава ДНК, не контролируемой естественным отбором. Броскость термина «недарвиновская эволюция» вызвала бум вокруг гипотезы Кимуры, получившей как ярых приверженцев[604], так и ярых противников[605]. И те, и другие, думается, впадают в крайности. В отечественной литературе с критикой представлений М. Кимуры выступил В. С. Кирпичников, а в поддержку его гипотезы — Ю. П. Алтухов и М. В. Волькенштейн[606].
Открытие вырожденности кода было лишь молекулярным подтверждением возможности существования нейтральных мутаций. Выше мы отмечали, что о нейтральности признаков и ее эволюционном значении писал еще С. С. Четвериков[607], работы которого, по-видимому, остались не известными М. Кимуре. В самом деле, мы хорошо знаем, что один и тот же аллель в разных условиях среды может иметь то положительную, то отрицательную селективную ценность. Но если это так, то существуют промежуточные состояния, когда селективная ценность мутаций оказывается нейтральной, т. е. состояния, в которых кривая селективной ценности проходит через нулевую точку. Это было ясно многим популяционистам еще на рубеже 1920—1930 годов; на существовании нейтральных мутаций в значительной степени основана теория генетического дрейфа.
Рис. 258. Возможный спектр мутаций кодона ГЦА, кодирующего синтез аминокислоты аланина. Благодаря вырожденности кода часть нуклеотидных замещений не приводит к информационно значимым итогам. В результате нейтральности мутации 4-6 оказываются фенотипически не выраженными.
Из Н. Н. Воронцова (1980).
Сейчас понятно, что на молекулярном уровне ≈2/3 замещений нуклеотидных пар вызывают соответствующий фенотипический эффект в виде изменения полипептидной цепи, а ≈1/3 замещений не контролируется отбором. В эволюции, таким образом, взаимно сочетаются как процессы отбора, так и стохастические процессы дрейфа нейтральных мутаций. Ясно, что нельзя считать «недарвиновскую эволюцию» чем-то антидарвинистическим, а существование нейтрализма[608] не исключает роли дарвиновского отбора в эволюции. Таким образом, «недарвиновская эволюция» за счет стохастических процессов и дарвиновский отбор есть непротиворечивые и взаимодополняющие друг друга концепции.